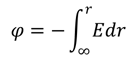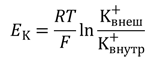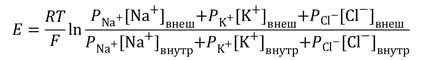С помощью зрения человек воспринимает около 80% информации. Утрата любого канала восприятия окружающего мира — большая трагедия для человека, но потерять зрение — основного поставщика внешней информации — особенно неприятно. Ученые всего мира ломают головы над решением проблемы слепоты — над тем, как остановить потерю зрения и как вернуть его уже ослепшим людям. И они делают значительные успехи. В 2016 году компания RetroSense поставила эксперимент по восстановлению зрения у крыс — и у них получилось.
Вспомним вкратце, как устроено человеческое зрение. В глазу у человека (а конкретнее, в сетчатке) находятся два типа светочувствительных нейронов, илифоторецепторов, —палочкии колбочки(рис. 1). Палочки отвечают за ночное зрение(зрение в условиях слабой освещенности), колбочки — за дневное. Колбочки делятся на три типа в зависимости от чувствительности к свету разных длин волн и, соответственно, отвечают за цветовое восприятие: одни — за красную область спектра, другие — за зеленую, третьи — за синюю. Раздражение всех трех типов колбочек дает человеку восприятие белого цвета.
Рисунок 1. Однажды в сетчатке глаза. Иллюстрация, хотя и основана на реальном строении сетчатки, намеренно упрощена. В действительности клетки-фоторецепторы расположены под ганглионарными клетками, а не над. То есть источник света попросту расположен с другой стороны. Чтобы увидеть рисунок в полном размере, нажмите на него.
Световой сигнал (пучок фотонов) поступает к фоторецепторам, которые содержат светочувствительные белки опсины (в палочках находится самый известный из них — родопсин[1], а в колбочках разные виды опсинов воспринимают разные цвета). В результате серии фотохимических трансформаций молекул этих пигментов меняется мембранный потенциал палочек/колбочек — световая энергия таким образом преобразуется в нервный импульс, который через биполярные клетки передается ганглионарным клеткам, а те, в свою очередь, направляют «увиденное» в мозг. Некоторые заболевания приводят к тому, что палочки или колбочки атрофируются и перестают работать. Последствия подобных изменений печальны — больной слепнет. Одно из таких заболеваний — пигментный ретинит (retinitis pigmentosa, RP). Эта патология наследственная и пока неизлечимая. Сейчас от RP страдает около полутора миллионов человек в мире [2]. Согласитесь, цифра немалая.
Конечно, никто не готов смириться с надвигающейся слепотой, и врачи с пациентами стараются всячески противостоять болезни. На данный момент есть три возможных решения. Во-первых, можно вводить в глаза моноклональные антитела, подавляющие патологический рост сосудов, питающих сетчатку, — ранибизумаб (Lucentis) или афлиберцепт (Eylea). Однако больным с пигментным ретинитом, в отличие от пациентов с возрастной макулярной дегенерацией, это лекарство приносит не очень много пользы. Второй выход — генная терапия. Этот вариант пока подходит только тем людям, у которых выявлена мутация в гене RPE65. Метод лечения, разработанный компанией Spark Therapeutics, сейчас проходит третью стадию клинических исследований. К сожалению, уже ослепшим пациентам этот метод никак не поможет. Третий вариант может подойти в качестве крайней меры, но на самом деле мало кто согласится на опасную и дорогостоящую операцию по трансплантации глаза. Кроме того, пациенту придется постоянно носить с собой электронный девайс «Аргус 2» стоимостью $150 000, что тоже может доставлять некоторые неудобства. Похожий прибор, сочетающий голографические и оптогенетические технологии с кибернетической «приставкой», уже был описан на «биомолекуле» [3], однако жить и взаимодействовать с ним не сильно проще, чем с «Аргусом 2».
Итак, все три способа вернуть зрение довольно ограничены и неудобны в применении. Так что же, любые усилия тщетны? На самом деле пациентам с неработающей сетчаткой не стоит отчаиваться: им на помощь всё-таки придет оптогенетика (рис. 2).
Рисунок 2. Как работает оптогенетика? В клеточных мембранах водорослей есть ионный канал (канальный родопсин, ChR), который открывается под действием голубого света. С помощью методов генетической инженерии ген этого канального белка можно внедрить в специфические нейроны головного мозга человека. Нейроны коммуницируют посредством электрических сигналов — «волн» поляризации и деполяризации их мембран, возникающих в результате открытия/закрытия ионных каналов. Управлять «общением» трансгенных нейронов, производящих канальный родопсин, можно всего лишь вспышками голубого света. Используя правильные последовательности световых импульсов, можно взять под контроль активность нейронных цепей и, например, заставить животное двигаться.
Оптогенетические технологии управления нейронами уже неоднократно обсуждались на страницах «биомолекулы» [4], [5]. Чаще всего в них применяют генетический вектор на основе аденоассоциированного вируса (AAV), произведенный компанией uniQure. Этот вектор уже одобрен для лечения гемофилии, болезни Хантингтона, сердечнососудистых заболеваний и хиломикронемии (наследственного дефицита липопротеинлипазы). Если решаются оптогенетические задачи, то вектор должен доставить ген бактериородопсина в ганглионарные клетки сетчатки, что сделает их светочувствительными. Так как наш мозг пластичен, то вскоре он научится воспринимать сигналы, исходящие непосредственно от ганглионарных клеток, и пациент может в буквальном смысле слова прозреть. Эта схема недавно была разработана компанией RetroSense и уже получила одобрение FDAдля лечения первого пациента. Кстати, инвестором компании недавно стал ученый и предприниматель российского происхождения Дмитрий Кузьмин. Схема терапии довольно простая — больному необходимо один или всего несколько раз в жизни сделать укол в глазное яблоко. Цена такого мероприятия пока что неизвестна, но, будем надеяться, его смогут себе позволить многие пациенты.
Этой успешной разработке предшествовал другой научный прорыв: ученые из Института биологических исследований Солка (Salk Institute) научились вводить гены не только в делящиеся, но и в постмитотические, «зрелые» клетки — например, клетки глаза, мозга, поджелудочной железы или сердца. Для того чтобы достичь своей цели, ученые использовали хорошо известный путь репарации NHEJ (non-homologous end-joining, негомологичное соединение концов). В природе этот механизм используется для починки ДНК путем простого «сшивания» концов разорвавшихся цепей. Чтобы иметь возможность прицельно вставлять ген в нужное место, был разработан особый подход, который исследователи назвали HITI (homology-independent targeted integration, прицельная интеграция, независимая от гомологии) [2], [6]. HITI-пакет состоит из коктейля нуклеиновых кислот, который доставляется в нейроны при помощи вирусного вектора. Таким способом ученым удалось частично восстановить зрение крысам с пигментным ретинитом, вызванным повреждением гена Mertk(кодирует трансмембранный белок из семейства тирозиновых киназ, необходимый для полноценного фагоцитоза в клетках пигментного эпителия сетчатки [7]). Эта технология выглядит многообещающей для клинических ситуаций, которые можно исправить «починкой» конкретных дефектных генов.
Еще совсем недавно было сложно предположить, что незрячие люди получат возможность прозреть, однако будущее надвигается на нас с невероятной скоростью и, судя по всему, несет нам немало побед над неизлечимыми болезнями.
Статья на конкурс «био/мол/текст»: Потенциал покоя — это важное явление в жизни всех клеток организма, и важно знать, как он формируется. Однако это сложный динамический процесс, трудный для восприятия целиком, особенно для студентов младших курсов (биологических, медицинских и психологических специальностей) и неподготовленных читателей. Впрочем, при рассмотрении по пунктам, вполне возможно понять его основные детали и этапы. В работе вводится понятие потенциала покоя и выделяются основные этапы его формирования с использованием образных метафор, помогающих понять и запомнить молекулярные механизмы формирования потенциала покоя.
«Био/мол/текст»-2011
Эта статья представлена на конкурс научно-популярных работ «био/мол/текст»-2011 в номинации «Лучшая обзорная статья».
Мембранные транспортные структуры — натрий-калиевые насосы — создают предпосылки для возникновения потенциала покоя. Предпосылки эти — разность в концентрации ионов на внутренней и наружной сторонах клеточной мембраны. Отдельно проявляет себя разность концентрации по натрию и разность концентрации по калию. Попытка ионов калия (K+) выровнять свою концентрацию по обе стороны мембраны приводит к его утечке из клетки и потере вместе с ними положительных электрических зарядов, за счёт чего значительно усиливается общий отрицательный заряд внутренней поверхности клетки. Эта «калиевая» отрицательность составляет бóльшую часть потенциала покоя (−60 мВ в среднем), а меньшую его часть (−10 мВ) составляет «обменная» отрицательность, вызванная электрогенностью самого ионного насоса-обменника.
Давайте разбираться подробнее.
Зачем нам нужно знать, что такое потенциал покоя и как он возникает?
Вы знаете, что такое «животное электричество»? Откуда в организме берутся «биотоки»? Как живая клетка, находящаяся в водной среде, может превратиться в «электрическую батарейку» и почему она моментально не разряжается?
Совершенно очевидно, что для понимания того, как работает нервная система, необходимо вначале разобраться, как работает её отдельная нервная клетка — нейрон. Главное, что лежит в основе работы нейрона — это перемещение электрических зарядов через его мембрану и появление вследствие этого на мембране электрических потенциалов. Можно сказать, что нейрон, готовясь к своей нервной работе, вначале запасает энергию в электрической форме, а затем использует ее в процессе проведения и передачи нервного возбуждения.
Таким образом, наш самый первый шаг к изучению работы нервной системы — это понять, каким образом появляется электрический потенциал на мембране нервных клеток. Этим мы и займёмся, и назовём этот процесс формированием потенциала покоя.
Определение понятия «потенциал покоя»
В норме, когда нервная клетка находится в физиологическом покое и готова к работе, у неё уже произошло перераспределение электрических зарядов между внутренней и наружной сторонами мембраны. За счёт этого возникло электрическое поле, и на мембране появился электрический потенциал — мембранный потенциал покоя.
Как известно из физики, электрические заряды (движущиеся и неподвижные) формируют в пространстве электромагнитное поле, которое влияет на тела, обладающие электрическим зарядом. С точки зрения электромагнетизма клеточную мембрану можно представить как плоский конденсатор, заполненный однородным диэлектриком из неполярных молекул. Если конденсатор заряжен, то внутри него возникает электрическое поле, обусловленное поверхностной плотностью заряда. На поверхности мембраны возникают некомпенсированные заряды: положительные у «отрицательной» поверхности и отрицательные — у «положительной» [6].
Таким образом, мембрана оказывается поляризованной. Это означает, что она имеет разный электрический потенциал наружной и внутренней поверхностей. Разность между этими потенциалами вполне возможно зарегистрировать.
В этом можно убедиться, если ввести внутрь клетки микроэлектрод, соединённый с регистрирующей установкой. Как только электрод попадает внутрь клетки, он мгновенно приобретает некоторый постоянный электроотрицательный потенциал по отношению к электроду, расположенному в окружающей клетку жидкости. Величина внутриклеточного электрического потенциала у нервных клеток и волокон, например, гигантских нервных волокон кальмара, в покое составляет около −70 мВ. Эту величину называют мембранным потенциалом покоя (МПП). Во всех точках аксоплазмы этот потенциал практически одинаков.
Ещё немного физики. Макроскопические физические тела, как правило, электрически нейтральны, т.е. в них в равных количествах содержатся как положительные, так и отрицательные заряды. Зарядить тело можно, создав в нем избыток заряженных частиц одного вида, например, трением о другое тело, в котором при этом образуется избыток зарядов противоположного вида. Учитывая наличие элементарного заряда (e), полный электрический заряд любого тела можно представить как q = ±N×e, где N — целое число.
Потенциал электростатического поля φ определяется как отношение потенциальной энергии Wпробного заряда q к величине этого заряда: φ = W/q, откуда следует, что потенциал численно равен потенциальной энергии, которой обладает в данной точке поля единичный положительный заряд. Единицей измерения потенциала служит вольт (1 В) [4]. В некоторых случаях потенциал электрического поля нагляднее определяется как физическая величина, численно равная работе внешних сил против сил электрического поля E при перемещении единичного положительного точечного заряда из бесконечности в данную точку. Последнее определение удобно записать следующим образом:
В электрофизиологии кроме потенциала покоя рассматриваются и другие электрические потенциалы: локальные постсинаптические и рецепторные потенциалы (возбуждающие и тормозные), электротоническиеи следовые потенциалы, миниатюрные потенциалы концевой пластинки, концентрационный потенциали потенциал действия[5].
Потенциал покоя — это разность электрических потенциалов, имеющихся на внутренней и наружной сторонах мембраны, когда клетка находится в состоянии физиологического покоя. Его величина измеряется изнутри клетки, она отрицательна и составляет в среднем −70 мВ (милливольт), хотя в разных клетках может быть различной: от −35 мВ до −90 мВ.
Важно учитывать, что в нервной системе электрические заряды представлены не электронами, как в обычных металлических проводах, а ионами — химическими частицами, имеющими электрический заряд. И вообще в водных растворах в виде электрического тока перемещаются не электроны, а ионы. Поэтому все электрические токи в клетках и окружающей их среде — это ионные токи.
Итак, изнутри клетка в покое заряжена отрицательно, а снаружи — положительно. Это свойственно всем живым клеткам, за исключением, разве что, эритроцитов, которые, наоборот, заряжены отрицательно снаружи. Если говорить конкретнее, то получается, что снаружи вокруг клетки будут преобладать положительные ионы (катионы Na+ и K+), а внутри — отрицательные ионы (анионыорганических кислот, не способные свободно перемещаться через мембрану, как Na+ и K+).
Теперь нам всего лишь осталось объяснить, каким же образом всё получилось именно так. Хотя, конечно, неприятно сознавать, что все наши клетки кроме эритроцитов только снаружи выглядят положительными, а внутри они — отрицательные.
Термин «отрицательность», который мы будем применять для характеристики электрического потенциала внутри клетки, пригодится нам для простоты объяснения изменений уровня потенциала покоя. В этом термине ценно то, что интуитивно понятно следующее: чем больше отрицательность внутри клетки — тем ниже в отрицательную сторону от нуля смещён потенциал, а чем меньше отрицательность — тем ближе отрицательный потенциал к нулю. Это намного проще понять, чем каждый раз разбираться в том, что же именно означает выражение «потенциал возрастает» — возрастание по абсолютному значению (или «по модулю») будет означать смещение потенциала покоя вниз от нуля, а просто «возрастание» — смещение потенциала вверх к нулю. Термин «отрицательность» не создаёт подобных проблем неоднозначности понимания.
Сущность формирования потенциала покоя
Попробуем разобраться, откуда берётся электрический заряд нервных клеток, хотя их никто не трёт, как это делают физики в своих опытах с электрическими зарядами.
Здесь исследователя и студента поджидает одна из логических ловушек: внутренняя отрицательность клетки возникает не из-за появления лишних отрицательных частиц (анионов), а, наоборот, из-за потери некоторого количества положительных частиц (катионов)!
Так куда же деваются из клетки положительно заряженные частицы? Напомню, что это покинувшие клетку и скопившиеся снаружи ионы натрия — Na+ — и калия — K+.
Главный секрет появления отрицательности внутри клетки
Сразу откроем этот секрет и скажем, что клетка лишается части своих положительных частиц и заряжается отрицательно за счёт двух процессов:
вначале она обменивает «свой» натрий на «чужой» калий (да-да, одни положительные ионы на другие, такие же положительные);
потом из неё происходит утечка этих «наменянных» положительных ионов калия, вместе с которыми из клетки утекают положительные заряды.
Эти два процесса нам и надо объяснить.
Первый этап создания внутренней отрицательности: обмен Na+ на K+
В мембране нервной клетки постоянно работают белковые насосы-обменники (аденозинтрифосфатазы, или Na+/K+-АТФазы), встроенные в мембрану. Они меняют «собственный» натрий клетки на наружный «чужой» калий.
Но ведь при обмене одного положительного заряда (Na+) на другой такой же положительный заряд (K+) никакого дефицита положительных зарядов в клетке возникать не может! Правильно. Но, тем не менее, из-за этого обмена в клетке остаётся очень мало ионов натрия, потому что они почти все ушли наружу. И в то же время клетка переполняется ионами калия, которые в неё накачали молекулярные насосы. Если бы мы могли попробовать на вкус цитоплазму клетки, мы бы заметили, что в результате работы насосов-обменников она превратилась из солёной в горько-солёно-кислую, потому что солёный вкус хлорида натрия сменился сложным вкусом довольно-таки концентрированного раствора хлорида калия. В клетке концентрация калия достигает 0,4 моль/л. Растворы хлорида калия в пределах 0,009–0,02 моль/л имеют сладкий вкус, 0,03–0,04 — горький, 0,05–0,1 — горько-солёный, а начиная с 0,2 и выше — сложный вкус, состоящий из солёного, горького и кислого [8].
Важно здесь то, что обмен натрия на калий — неравный. За каждые отданные клеткой три иона натрия она получает всего два иона калия. Это приводит к потере одного положительного заряда при каждом акте ионного обмена. Так что уже на этом этапе за счёт неравноценного обмена клетка теряет больше «плюсов», чем получает взамен. В электрическом выражении это составляет примерно −10 мВ отрицательности внутри клетки. (Но помните, что нам надо ещё найти объяснение для оставшихся −60 мВ!)
Чтобы легче было запомнить работу насосов-обменников, образно можно выразиться так: «Клетка любит калий!» Поэтому клетка и затаскивает калий к себе, несмотря на то, что его и так в ней полно. И поэтому она невыгодно обменивает его на натрий, отдавая 3 иона натрия за 2 иона калия. И поэтому она тратит на этот обмен энергию АТФ. И как тратит! До 70% всех энергозатрат нейрона может уходить на работу натрий-калиевых насосов. (Вот что делает любовь, пусть она даже и не настоящая!)
Кстати, интересно, что клетка не рождается с готовым потенциалом покоя. Ей его ещё надо создать. Например, при дифференцировке и слиянии миобластов потенциал их мембраны изменяется от −10 до −70 мВ, т.е. их мембрана становится более отрицательной — поляризуется в процессе дифференцировки. А в экспериментах на мультипотентных мезенхимальных стромальных клетках костного мозга человека искусственная деполяризация, противодействующая потенциалу покоя и уменьшающая отрицательность клеток, даже ингибировала (угнетала) дифференцировку клеток [1].
Образно говоря, можно выразиться так: Создавая потенциал покоя, клетка «заряжается любовью». Это любовь к двум вещам:
любовь клетки к калию (поэтому клетка насильно затаскивает его к себе);
любовь калия к свободе (поэтому калий покидает захватившую его клетку).
Механизм насыщения клетки калием мы уже объяснили (это работа насосов-обменников), а механизм ухода калия из клетки объясним ниже, когда перейдём к описанию второго этапа создания внутриклеточной отрицательности. Итак, результат деятельности мембранных ионных насосов-обменников на первом этапе формирования потенциала покоя таков:
Дефицит натрия (Na+) в клетке.
Избыток калия (K+) в клетке.
Появление на мембране слабого электрического потенциала (−10 мВ).
Можно сказать так: на первом этапе ионные насосы мембраны создают разность концентраций ионов, или градиент (перепад) концентрации, между внутриклеточной и внеклеточной средой.
Второй этап создания отрицательности: утечка ионов K+ из клетки
Итак, что начинается в клетке после того, как с ионами поработают её мембранные натрий-калиевые насосы-обменники?
Из-за образовавшегося дефицита натрия внутри клетки этот ион при каждом удобном случае норовит устремиться внутрь: растворённые вещества всегда стремятся выровнять свою концентрацию во всём объёме раствора. Но это у натрия получается плохо, поскольку ионные натриевые каналы обычно закрыты и открываются только при определённых условиях: под воздействием специальных веществ (трансмиттеров) или при уменьшении отрицательности в клетке (деполяризации мембраны).
В то же время в клетке имеется избыток ионов калия по сравнению с наружной средой — потому что насосы мембраны насильно накачали его в клетку. И он, тоже стремясь уравнять свою концентрацию внутри и снаружи, норовит, напротив, выйти из клетки. И это у него получается!
Тут ещё важно понять то, что ионы натрия и калия как бы «не замечают» друг друга, они реагируют только «на самих себя». Т.е. натрий реагирует на концентрацию натрия же, но «не обращает внимания» на то, сколько вокруг калия. И наоборот, калий реагирует только на концентрацию калия и «не замечает» натрий. Получается, что для понимания поведения ионов надо по отдельности рассматривать концентрации ионов натрия и калия. Т.е. надо отдельно сравнить концентрацию по натрию внутри и снаружи клетки и отдельно — концентрацию по калию внутри и снаружи клетки, но не имеет смысла сравнивать натрий с калием, как это, бывает, делается в учебниках.
По закону выравнивания химических концентраций, который действует в растворах, натрий «хочет» снаружи войти в клетку; туда же его влечёт и электрическая сила (как мы помним, цитоплазма заряжена отрицательно). Хотеть-то он хочет, но не может, так как мембрана в обычном состоянии плохо его пропускает. Натриевые ионные каналы, имеющиеся в мембране, в норме закрыты. Если все же его заходит немножко, то клетка сразу же обменивает его на наружный калий с помощью своих натрий-калиевых насосов-обменников. Получается, что ионы натрия проходят через клетку как бы транзитом и не задерживаются в ней. Поэтому натрий в нейронах всегда в дефиците.
А вот калий как раз может легко выходить из клетки наружу! В клетке его полно, и она его удержать не может. Он выходит наружу через особые каналы в мембране — «калиевые каналы утечки», которые в норме открыты и выпускают калий [5, 7].
К+-каналы утечки постоянно открыты при нормальных значениях мембранного потенциала покоя и проявляют взрывы активности при сдвигах мембранного потенциала, которые длятся несколько минут и наблюдаются при всех значениях потенциала. Усиление К+-токов утечки ведёт к гиперполяризации мембраны, тогда как их подавление — к деполяризации. ...Однако, существование канального механизма, ответственного за токи утечки, долгое время оставалось под вопросом. Только сейчас стало ясно, что калиевая утечка — это ток через специальные калиевые каналы.
От химического — к электрическому
А теперь — ещё раз самое главное. Мы должны осознанно перейти от движения химических частицк движению электрических зарядов.
Калий (K+) положительно заряжен, и поэтому он, когда выходит из клетки, выносит из неё не только самого себя, но и положительный заряд. За ним изнутри клетки к мембране тянутся «минусы» — отрицательные заряды. Но они не могут просочиться через мембрану — в отличие от ионов калия — т.к. для них нет подходящих ионных каналов, и мембрана их не пропускает. Помните про оставшиеся необъяснёнными нами −60 мВ отрицательности? Это и есть та самая часть мембранного потенциала покоя, которую создаёт утечка ионов калия из клетки! И это — большая часть потенциала покоя.
Для этой составной части потенциала покоя есть даже специальное название — концентрационный потенциал [5]. Концентрационный потенциал — это часть потенциала покоя, созданная дефицитом положительных зарядов внутри клетки, образовавшимся за счёт утечки из неё положительных ионов калия.
Ну, а теперь немного физики, химии и математики для любителей точности.
Электрические силы связаны с химическими по уравнению Гольдмана. Его частным случаем является более простое уравнение Нернста, по формуле которого можно рассчитать трансмембранную диффузионную разность потенциалов на основе различной концентрации ионов одного вида по разные стороны мембраны. Так, зная концентрацию ионов калия снаружи и внутри клетки, можно рассчитать калиевый равновесный потенциал EK:
где Ек — равновесный потенциал, R — газовая постоянная, Т — абсолютная температура, F — постоянная Фарадея, К+внеш и K+внутр — концентрации ионов К+ снаружи и внутри клетки, соответственно. По формуле видно, что для расчёта потенциала между собой сравниваются концентрации ионов одного вида — K+.
Более точно итоговая величина суммарного диффузионного потенциала, который создаётся утечкой нескольких видов ионов, рассчитывается по формуле Гольдмана-Ходжкина-Катца. В ней учтено, что потенциал покоя зависит от трех факторов: (1) полярности электрического заряда каждого иона; (2) проницаемости мембраны Р для каждого иона; (3) [концентраций соответствующих ионов] внутри (внутр) и снаружи мембраны (внеш). Для мембраны аксона кальмара в покое отношение проводимостей РK : PNa :PCl = 1 : 0,04 : 0,45 [5].
Заключение
Итак, поте нциал покоя состоит из двух частей:
−10 мВ, которые получаются от «несимметричной» работы мембранного насоса-обменника (ведь он больше выкачивает из клетки положительных зарядов (Na+), чем закачивает обратно с калием).
Вторая часть — это всё время утекающий из клетки калий, уносящий положительные заряды. Его вклад — основной: −60 мВ. В сумме это и дает искомые −70 мВ.
Что интересно, калий перестанет выходить из клетки (точнее, его вход и выход уравниваются) только при уровне отрицательности клетки −90 мВ. В этом случае сравняются химические и электрические силы, проталкивающие калий через мембрану, но направляющие его в противоположные стороны. Но этому мешает постоянно подтекающий в клетку натрий, который несёт с собой положительные заряды и уменьшает отрицательность, за которую «борется» калий. И в итоге в клетке поддерживается равновесное состояние на уровне −70 мВ.
Вот теперь мембранный потенциал покоя окончательно сформирован.
Схема работы Na+/K+-АТФазы наглядно иллюстрирует «несимметричный» обмен Na+ на K+: выкачивание избыточного «плюса» в каждом цикле работы фермента приводит к отрицательному заряжению внутренней поверхности мембраны. Чего в этом ролике не сказано, так это того, что АТФаза ответственна за менее чем 20% потенциала покоя (−10 мВ): оставшаяся «отрицательность» (−60 мВ) появляется за счет выхода из клетки через «калиевые каналы утечки» ионов K+, стремящихся выровнять свою концентрацию внутри клетки и вне нее.
Норадреналин. Гормон и нейромедиатор. Характер совсем не нордический: слывет «медиатором бодрствования», зачинщиком реакций «бей или беги» (черта семейная, брателло Адреналин способен на худшее).
«В глубине души» — это выражение мы используем в случае, когда говорим о каких-то представлениях, лежащих в основе нашего мировосприятия. Порой мы не всегда готовы с ними согласиться, но знаем, что они верны и влияют на нашу жизнь. В глубине нашего мозга находится скопление нервных клеток, которое влияет на нас: изменяет память, внимание, поведение. Отростки этих нейронов устремляются к различным отделам коры, чтобы на месте из синапсов выделилось вещество со знакомым нам названием — норадреналин.
Знакомая схема
Рисунок 1. Норадренергические волокна головного мозга.Из ряда глубоких структур мозга отростки норадреналиновых нейронов направляются в мозжечок, миндалевидное тело, кору и таламус.
Раньше я уже писал про дофамин [1]и серотонин [2]. Теперь настало время норадреналина (международное непатентованное наименование — норэпинефрин, у нас используется название из Британской фармакопеи). Это вещество не часто появляется в научных новостях, так что будем исправлять эту несправедливость. Не бывает неинтересных нейромедиаторов — бывает мало доступного материала.
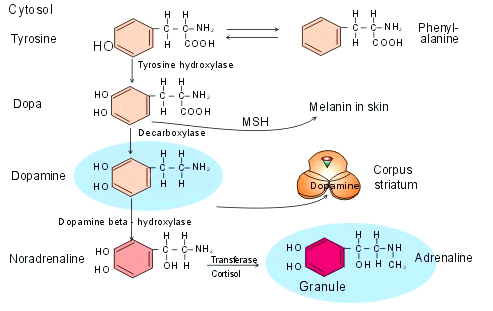
Источником норадреналина в организме всех млекопитающих, в том числе и человека, является образование в глубоких отделах головного мозга, которое носит довольно необычное название — голубое пятно. Из голубого пятна множество отростков разбегается в различные отделы головного мозга: мозжечок, таламус, миндалевидное тело и кору (рис. 1). Подобная организация путей в мозге характерна для серотониновой и дофаминовой систем. По широте распределения связей норадреналиновые пути особенно напоминают серотониновую систему. Если рассматривать синтез норадреналина, то мы увидим, что для образования дофамина и норадреналина необходимы одни и те же реакции: дофамин является предшественником норадреналина (рис. 2).
Рисунок 2. Синтез норадреналина. На схеме также показаны пути синтеза других нейромедиаторов.
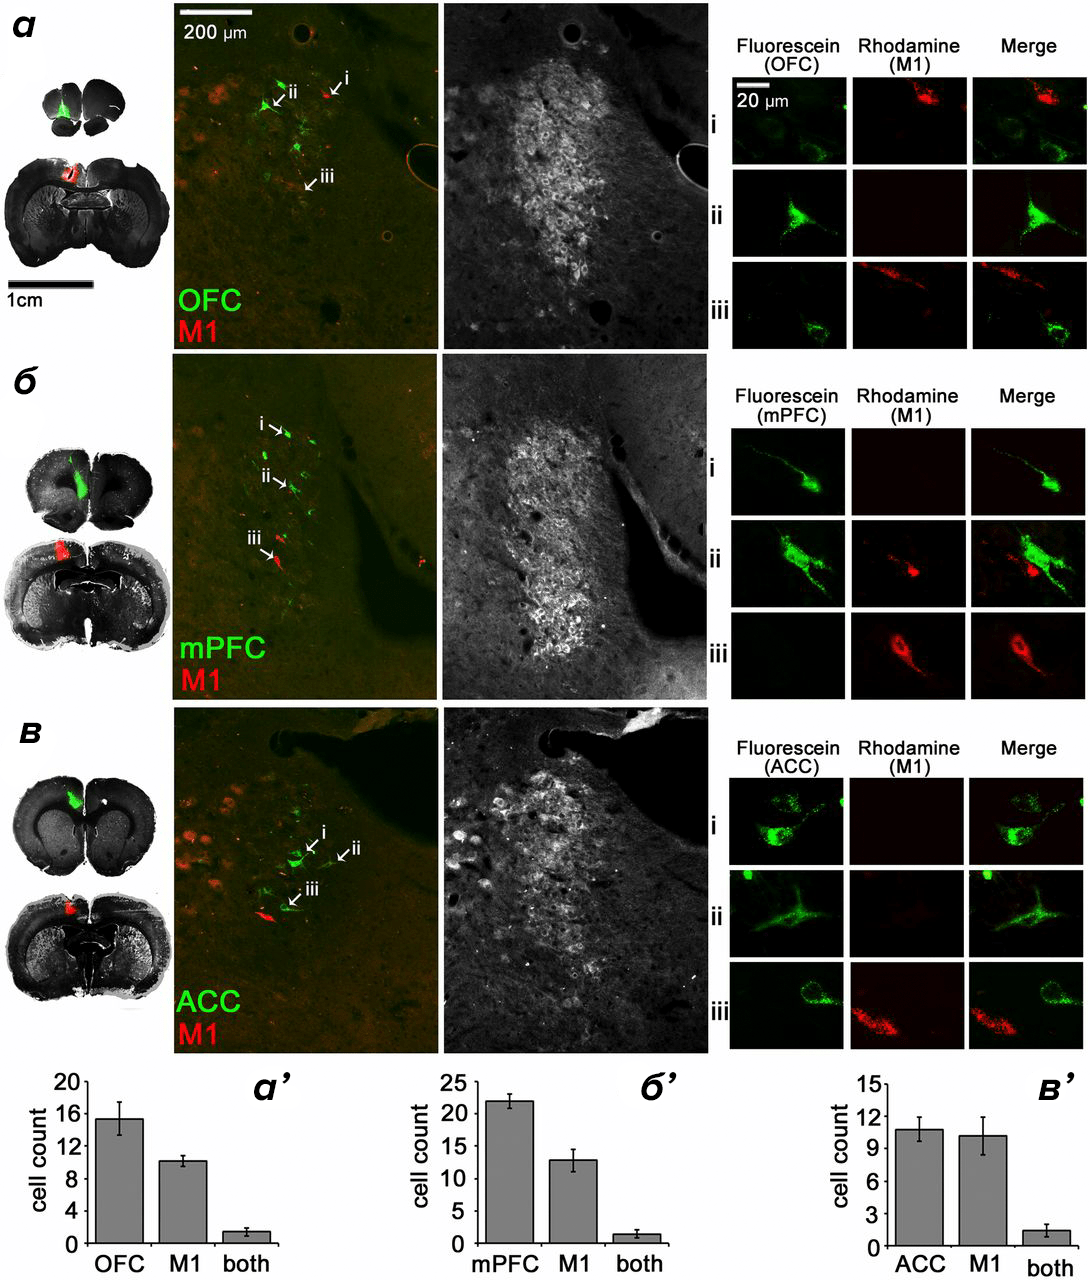
В самόм голубом пятне существует четкое разделение нейронов по функциям, по тем отделам головного мозга, куда идут отростки норадренергических нейронов [3]. Для изучения такой функциональной специализации ученые вводили в моторную область и другие участки коры крыс специальный флуоресцирующий реагент, способный к ретроградному перемещению в клетках. Оказавшись в коре, вещество по аксонам мигрирует в голубое пятно, где можно будет распознать отдельные нейроны на срезах нервной ткани. В эксперименте сравнивали количество «прокрашенных» нейронов при парных инъекциях: одна инъекция проводилась в область моторной коры, локализация другой менялась в зависимости от изучаемого участка. Оказалось, что в среднем только около 5% нейронов, находящихся в голубом пятне, имели проекции в оба изучаемых участка, и отдельные участки коры получали сигналы преимущественно от «своих» норадренергических нейронов (рис. 3). Также различные популяции нейронов в голубом пятне отличались по биохимическим показателям и по электрической активности в зависимости от того, в какие участки коры направлялись их отростки. Это говорит о довольно сложной организации голубого пятна.
Рисунок 3. Различные популяции норадренергических нейронов в голубом пятне крысы. На рисунке изображены нейроны, отростки которых связаны с различными отделами головного мозга. М1 — моторная кора; OFC — орбитофронтальная кора, mPFC — срединная префронтальная кора; ACC — передний отдел поясной извилины.
Одна из главных функций норадренергической системы — регуляция активности организма. Работа голубого пятна связана с такими процессами, как сон и бодрствование [4]. При спокойном бодрствовании голубое пятно генерирует электрические импульсы с частотой 1–3 Гц (1–3 импульса в секунду). При предъявлении важных стимулов частота импульсов увеличивается до 8–10 Гц. Во время фазы медленного сна активность голубого пятна постепенно снижается, а фаза быстрого сна характеризуется почти полной инактивацией норадренергической системы. Кроме голубого пятна в регуляции цикла бодрствования задействованы и другие структуры глубоких отделов головного мозга — вместе они образуют целую систему регуляции активности нервной системы. Однако главный заводила в этой системе — голубое пятно [5].
Внимание! Внимание!
Голубое пятно входит в сложную сеть отделов нервной системы, которая регулирует внимание. Кроме норадреналиновых структур внимание зависит от серотониновых нейронов ядер шваи холинергических клеток, находящихся, например, в базальном ядре Мейнерта. Волокна голубого пятна, идущие в таламус и кору, больше всего влияют на поведение и внимание. Связи, соединяющие голубое пятно с гиппокампом (центром памяти) и миндалиной (центром эмоциональных реакций), оказывают влияние на процессы запоминания и — как следствие — на обучение.
Могло сложиться впечатление, что голубое пятно работает только на «выход», а не на «вход», но это не так: сигналы от сенсорных систем также приходят в него и меняют его активность. Входящие сигналы, не связанные с наказанием или наградой, вызывают небольшое повышение активности голубого пятна, но она быстро возвращается к прежнему уровню. Более важные события, оказывающие негативное или положительное влияние на организм, меняют активность голубого пятна значительно. Учитывая огромное количество связей этого отдела нервной системы с другими ее частями, будет меняться и активность связанных с ним отделов. Поступающая сенсорная информация будет модулировать активность головного мозга, не приводя к конкретным действиям. Это то, что ученик академика Павлова Пётр Степанович Купалов назвал усеченными условными рефлексами: реакция нервной системы на входящий стимул в виде изменения своей активности, без конкретных действий. По-видимому, подобные рефлексы осуществляются через голубое пятно.
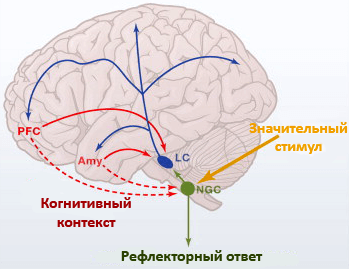
Рисунок 4. Схема переключения внимания и его регуляции.LC (locus coeruleus) — голубое пятно; PFC (prefrontal cortex) — префронтальная кора; Amy — миндалина; NGC (nucleus gigantocellularis) — гигантоклеточное ядро ретикулярной формации; влияние норадреналина показано синими стрелками. Несмотря на то, что сигналы, входящие с периферии в голубое пятно (желтые и зеленые элементы), способны переносить фокус нашего внимания на какие-то объекты, сознательная активность (красные элементы) также позволяет нам произвольно регулировать внимание.
Приблизительная схема работы головного мозга при установлении фокуса внимания на какой-то задаче или определенном предмете может выглядеть так. Сенсорная информация приходит в голубое пятно из более глубоких отделов. Оттуда по норадренергическим волокнам сигналы отправляются в другие отделы мозга, отвечающие за мышление и поведенческие реакции — префронтальную кору и миндалевидное тело (рис. 4). Их активность, измененная под воздействием норадреналина, приводит к смещению внимания или конкретным действиям. Эти действия могут основываться на условных или безусловных рефлексах, что в принципе не так уж и важно. Однако активность лобной коры и миндалевидного тела может влиять на состояние голубого пятна: мы способны сознательно игнорировать поступающие извне сигналы. Например, углубляться в чтение книги при работающем телевизоре [6].
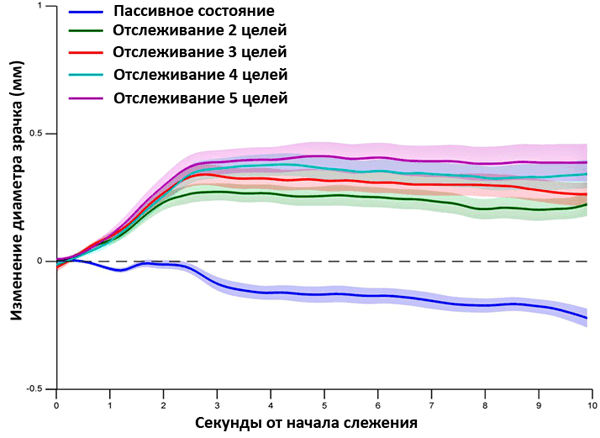
Уделяемое той или иной проблеме внимание сложно измерить напрямую. Существуют когнитивные тесты, используемые в психологии и медицине, но биологов обычно интересуют показатели, которые напрямую связаны с физиологическими изменениями. Для изучения внимания таким показателем стал размер зрачка[7]. В одном исследовании, проведенном норвежско-британским коллективом, учитывались изменения в размере зрачков и активности голубого пятна при отслеживании разного количества движущихся точек [8]. Размер зрачка регистрировался при помощи пупиллометрии: этот метод позволяет с большой точностью отследить изменения диаметра отверстия, которое пропускает свет на сетчатку глаза. Активность мозга считывалась при помощи одного из самых популярных методов в функциональной нейробиологии — функциональной магнитно-резонансной томографии (фМРТ). При проведении фМРТ учитывается сигнал от насыщенного кислородом гемоглобина: чем больше такого гемоглобина в определенной части мозга, тем активнее она работает. После обработки данных стало ясно, что:
сама задача отслеживания точек приводила к увеличению диаметра зрачка;
это увеличение было пропорционально количеству отслеживаемых целей (рис. 5);
активное слежение за точками на экране увеличивало активность множества корковых отделов мозга, а также голубого пятна.
Эти результаты демонстрируют, что изменение активности голубого пятна у человека связано с изменением объема и направленности его внимания.
Рисунок 5. Корреляция между размером зрачков и количеством отслеживаемых движущихся точек.
Память — это основа нашей личности, но запоминаем мы не каждый день своей жизни. В памяти чаще всего запечатлевается эмоционально окрашенная информация. Однажды я прочел частное жизнеописание одной женщины, составленное родственниками с ее слов. Тогда меня удивило, что бόльшую часть текста составляли события времен Великой Отечественной войны. Она мало говорила про свою жизнь и жизнь семьи после 1945-го года, хотя жила она долго. Можно бесконечно спорить, что запоминается лучше — хорошее или плохое (об экспериментах, посвященных механизмам запоминания мошенников и добропорядочных граждан, например, рассказано в статье [9]). Сейчас же нас интересует, как в человеческом мозге осуществляется избирательное запоминание.
При эмоциональном возбуждении в нашем организме вырабатываются адреналин и кортизол — широко известные гормоны стресса. Интересно, что их воздействие на память осуществляется не в момент совершения действия или обучения, а уже после их завершения. Например, введение кортикостерона (аналог человеческого кортизола) мышам в гиппокамп улучшает запоминание правильного способа выполнения задания [10], но использование адреноблокаторов — препаратов, мешающих связыванию адреналина с рецепторами, — ухудшает запоминание [11]. Скорее всего, глюкокортикоидные гормоны могут улучшить запоминание, если миндалевидное тело (центр эмоционального реагирования в нашем мозге) активировано при помощи норадренергической системы. Основной объем работы производят усеченные условные рефлексы, которые настраиваютпамять на запоминание тех или иных событий или деталей.
Интересно, что при помощи фМРТ можно выявить отдельные функциональные сети в мозге, которые активируются при успешных и неуспешных действиях человека [12]. Успешные действия вызывают активацию голубого пятна и дорсолатеральной префронтальной коры, а ошибочные — системы «голубое пятно — поясная кора» (поясная кора — центр определения ошибок нашего мозга). Первая связь может напрямую влиять на принятие решений путем выработки поведенческих стратегий и их коррекции.
Больше или меньше
Очень близким понятием к вниманию и возбуждению в биологии поведения является стресс. Мы привыкли к тому, что термин «стресс» несет негативный смысл, но в широком смысле стресс — это реакция на новое. Как мы уже знаем, появление чего-то нового в нашем поле восприятия меняет активность мозга, что происходит путем перестройки работы голубого пятна. Стрессовая реакция запускается после возбуждения голубого пятна и ряда дополнительных, не входящих в него, норадренергических структур. Активность норадренергической системы может быть повышена (гиперфункция) и вызывать тревогу и стресс, но также существуют состояния ее пониженной функции (гипофункция), что приводит к соответствующим эффектам (табл. 1).
Таблица 1. Эффекты повышения и снижения активности норадренергической системы (НАС).Таблица из[13], адаптирована.
Повышенная активность НАС
Сниженная активность НАС
Возбуждение
Повышенная возбудимость
Заторможенность
Сон
Бессонница
Сонливость
Эмоции
Страх, тревога, агрессия
Притупление чувств, апатия
Дефицит норадреналина приводит к затормаживанию, снижению интенсивности всех психических процессов. В случае с избытком всё происходит с точностью до наоборот.
Если посмотреть на таблицу, то можно сообразить, что все психические расстройства могут быть поделены на две группы в зависимости от того, в каком состоянии — гипо- или гиперфункции — находится норадренергическая система нашего организма. Повышенная активность этой системы наблюдается при психических нарушениях, которые сопровождаются тревогой и возбуждением: посттравматическом стрессовом расстройстве, панических атаках и маниакальных состояниях. С депрессией и шизофренией дело обстоит сложней. В случае депрессии существуют широко известные варианты болезни с подавленностью и сниженным настроением. Однако есть клинические случаи депрессии, при которых серьезную часть симптоматики представляют тревога и возбуждение. В первом случае активность норадренергической системы будет снижена, а во втором — наоборот [13].
Шизофрения, как я рассказывал ранее в материале про дофамин [1], представляет собой комплекс симптомов, которые могут быть поделены на три группы — позитивные (бред, галлюцинации), негативные (уменьшение яркости эмоций, снижение активности) и когнитивные (нарушение обработки информации). Как уже можно было догадаться, негативная симптоматика связана с гипоактивацией норадренергической системы, а позитивная вызывается ее повышенной активностью [14].
На этом описание норадренергической системы можно считать законченным, хотя и не полным. В целом картина с тремя основными нейромедиаторами выглядит следующим образом. Дофаминовая система — это генеральный директор компании «Мозг». Он управляет общим вектором развития, и его решения порой могут иметь не самые рациональные основания. Серотониновая система — менеджеры и управляющие, на долю которых выпала организация и упорядочивание всей работы. Норадреналинв этой фирме — исполнительный директор, щедро раздающий указания и распределяющий ресурсы. Совместная деятельность этих «управленцев» создает нашу психику, наше «Я», которое напрямую зависит от генов, задействованных в работе этих систем, и структуры самого мозга, которая меняется на пути индивидуального развития каждого человека.